整体
基础 · 初中已探索 1 / 10 章
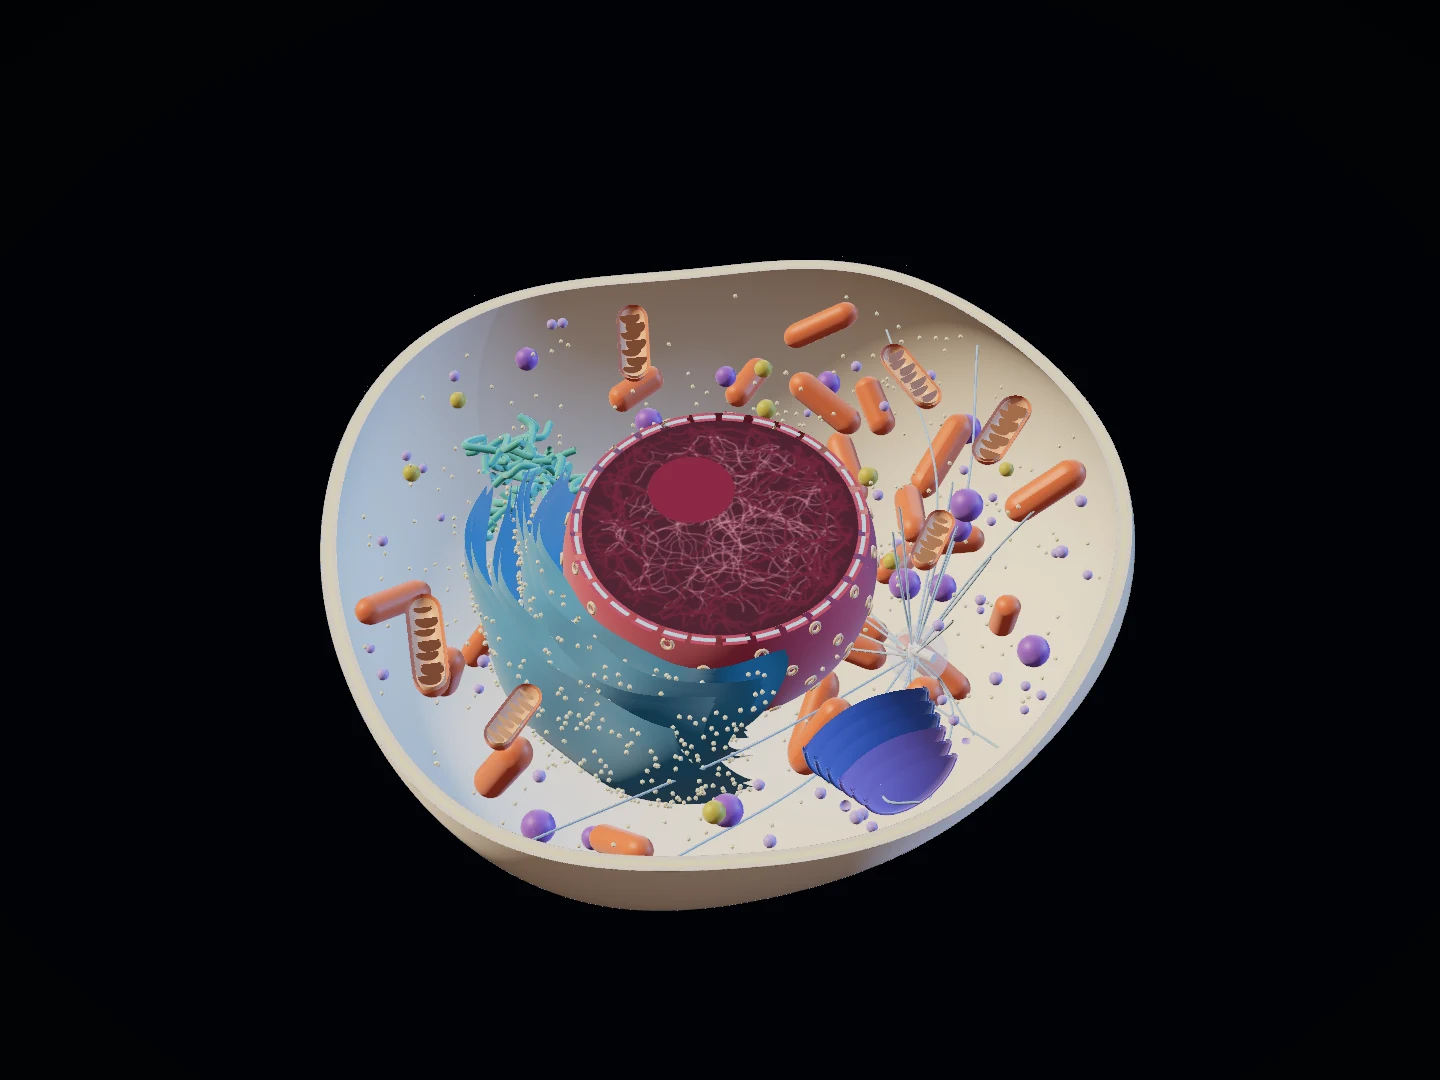
观察对象动物细胞
视野宽度—
典型大小≈ 20 µm
正在打开三维图谱…
拖动旋转 · 滚动缩放 · 点击结构
BIOLOGY / 001 · 交互图谱
生命,自有 内部秩序。
一层薄膜之内,有一整个协作的世界。旋转、剖开、观察,从结构读懂生命。
THE COLLECTION / 001—008
一部可以转动的自然图谱
同一套原创模型,成为可交互的结构,也成为静态图解。
模型图解,不是显微照片 · 原创建模与制作:OpenPith OpenPith · 2026
FIELD NOTES
知识与图像来源
模型由 OpenPith 原创制作。结构解释参考 OpenStax Biology 2e、NCBI Bookshelf 和 Nobel Prize。颜色用于区分结构,不代表细胞的天然颜色。
光学显微镜通常不能分辨细胞膜双层。荧光标记只能显示被标记的结构;电镜切片也不等于完整三维细胞。
剖面、配色与结构数量用于教学。细胞没有这样整齐的开窗,内部也并非静止的展柜。
从边界,到协作
开启 JavaScript 可旋转模型。下方仍可阅读细胞结构与学习内容。
细胞是生命活动的基本单位。动物细胞、植物细胞和细菌都有细胞膜、细胞质、核糖体及遗传物质,但内部组织方式并不相同。
尺度
从微米走向纳米。先认识尺寸,再理解我们为什么需要不同的观察工具。
1 微米等于 1,000 纳米。细胞、线粒体和膜的厚度跨越多个数量级。放大一幅图片不会增加其真实分辨率。
细胞大小存在差异。这里给出典型量级;不是某个物种的精确测量。
整体
不是把细胞器装进袋子,而是让边界、信息、能量和物质流动成为一个系统。
细胞膜选择性地交换物质。细胞质中的结构与分子不断运动。细胞核、核糖体和内膜系统参与信息表达与物质合成。
通用动物细胞没有唯一外形。模型减少了细胞器数量,也扩大了结构间距。
细胞器
线粒体的嵴、叶绿体的基粒、内质网的膜面,都把有限空间变成工作的界面。
膜将不同反应分区。褶皱和层叠增加反应界面,但各种膜系统并不彼此任意连通。
核糖体和中心体没有包膜;细胞器的定义在不同教材中存在用语差异。
比较
共享生命的基本材料,以不同方式组织它们。差别不只是“有没有叶绿体”。
动物和植物是真核生物。细菌没有膜包围的细胞核,但有 DNA、核糖体和细胞膜。叶肉细胞通常具有叶绿体和大液泡。
细菌是概括示意,不对应完整的大肠杆菌包膜。部分细菌无细胞壁;根细胞通常没有叶绿体。
细胞膜
亲水的头部朝向水,疏水的尾部聚在内部。蛋白质赋予这道边界更多选择。
膜是动态的脂质与蛋白质系统。小的非极性分子较易穿过脂质层,离子通常需要通道或载体。
磷脂数量与蛋白尺寸并非精确比例。膜两侧成分不完全相同,糖链一般位于细胞外侧。
膜运输
顺梯度可以被动运输;逆电化学梯度需要能量耦联。大块物质通过囊泡进出。
通道与载体帮助特定物质过膜。载体数量有限,因此通量会饱和。钠钾泵每次消耗一个 ATP,通常将 3 个钠离子泵出、2 个钾离子泵入。
离子方向取决于电化学梯度,本浓度控件只模拟中性溶质。继发主动运输利用已有梯度,并不直接水解 ATP。
渗透
水的净移动改变细胞体积。植物细胞壁约束膨胀,却不能阻止原生质体失水收缩。
在此模型的条件下,水净流向有效溶质浓度较高的一侧。植物细胞在低渗环境产生膨压,高渗环境可发生质壁分离。
渗透压、细胞壁弹性和膜通透性共同决定结果。示意缩放不等于实验测量的体积曲线。
分泌路径
从核糖体到内质网、再到高尔基体,分泌蛋白经历合成、加工、分选和运输。
具有适当信号的蛋白进入内质网,经过囊泡到达高尔基体,再被分选到不同去向。分泌囊泡最终与质膜融合。
并非所有蛋白质都走这条路径。真实内膜系统包含回收与逆向运输;这里聚焦分泌的正向主线。
骨架与运输
微管和肌动蛋白构成动态网络。马达蛋白消耗能量,沿轨道搬运囊泡等货物。
不同马达蛋白具有不同方向偏好。微管、肌动蛋白及其马达参与细胞内运输,也参与形状变化和分裂。
囊泡只走 7 条微管,暂停、掉落与换轨按固定规则出现。驱动蛋白每步 8 nm、消耗 1 个 ATP。细胞质流动还涉及肌动蛋白—肌球蛋白等机制,不能全部归为微管运输。
证据与模型
把观察证据与解释模型分开,才能既看懂图,也不被图误导。
染色、荧光标记和图像处理会改变呈现方式。应查看比例尺、标记对象和成像方法;模型则应说明选择性简化。
本页所有图解来自原创三维模型,不是实验显微图像。荧光共定位也不自动证明两个分子直接相互作用。